크라이오닉스의 생존성, 동결보호제 독성 및 저온 손상
Viability, Cryoprotectant Toxicity and Chilling Injury in Cryonics
I. 도입부
장기의 냉동보존을 위한 연구는 드물고, 크라이오닉스의 목표만을 위해 수행하는 연구는 그보다도 드뭅니다. 특히 장기 보존에 전념하는 저온생물학자들에게서 배울 점이 많지만, 크라이오닉스는 목표가 다르므로 다른 방법이 필요할 수도 있습니다.
장기 냉동보존 연구자의 목표는 생존성, 즉 냉동보존 후 다시 데운 장기가 살아 있는 상태에서 수행하는 기능을 최대한 높이는 것입니다. 반면 크라이오닉스 연구의 목표는 미래 기술을 이용한 복원 가능성을 최대화하는 방식으로 장기, 특히 뇌를 보존하는 것입니다. 물론 여기에는 미래 기술의 능력을 미리 추정하는 일이 포함됩니다.
예를 들어 보존법 A가 생존성 60%와 구조 보존율 80%를 보이고 보존법 B가 생존성 50%와 구조 보존율 90%를 보인다면, 장기 냉동보존 연구자는 A를, 크라이오닉스 연구자는 B를 선호할 수 있습니다. 보통은 구조가 잘 보존되어야 기능도 좋지만, 재가온 중 손상을 최소화하는 방법이 냉각 중 구조 보존에는 최적이 아닐 가능성도 있습니다.
유리화에는 점도를 높이고, 물 분자와 수소 결합을 만들고, 전해질을 희석하거나 총괄성 효과로 얼음 형성을 방해하여 얼음 생성 및 동결 손상을 막는 동결보호제, 즉 ‘부동액 성분’이 필요합니다. 얼음 형성에는 먼저 핵이 생기는 핵생성과 그 핵에서 얼음 결정이 자라는 결정 성장이라는 두 단계가 있습니다.
II. 막전위, 칼륨/나트륨 비율과 생존성
세포막은 어떤 이온과 분자는 다른 것보다 쉽게 통과시키고 어떤 분자는 전혀 통과시키지 않으므로 반투막이라고 할 수 있습니다. 화학 물질과 이온의 농도는 각각 평형에 도달해야 합니다. 이온의 경우에는 전기적 평형도 포함됩니다. 일부 이온과 분자는 세포 에너지를 사용해 능동적으로 운반됩니다. 세포 안에는 막을 통과하기에는 너무 큰, 음전하를 띤 분자(음이온 A−)가 많습니다. 대부분 단백질, 아미노산 및 유기 인산염입니다. 세포막은 일반적으로 세포 밖의 양전하를 띤 칼슘 이온(Ca2+)도 통과시키지 않습니다.
느린 누출 통로는 칼륨(K+), 나트륨(Na+), 염화물(Cl−) 이온이 세포막을 건너도록 합니다. K+와 Na+는 모두 세포 안의 음이온에 강하게 끌리지만, 이 통로를 통해 K+가 들어오는 속도는 Na+의 100배입니다. Na+(원자번호 11)는 K+(원자번호 19)보다 작은 이온이지만, 전하가 더 집중되어 있어 물 분자를 더 단단히 붙잡습니다. 물 분자를 포함한 Na+의 지름은 5Å인 데 비해 K+는 3.8Å에 불과합니다. 그래서 수화된 K+는 느린 누출 통로를 훨씬 쉽게 통과합니다. 일반적으로 세포 밖 Na+ 농도는 안보다 약 10배 높고, K+ 농도는 안이 밖보다 약 20~35배 높습니다. 평형 상태에서는 K+를 세포 안으로 끌어들이는 전기력이 K+를 밖으로 밀어내려는 농도 구배의 힘과 같습니다.
세포 안으로 들어오는 Na+와 K+만으로는 세포 내 음이온의 음전하를 중화할 수 없습니다. 따라서 동물 세포의 내부는 순음전하를 띱니다. 세포막은 안쪽에는 음전하, 바깥쪽에는 양전하가 있는 축전기처럼 작동합니다. 막을 가로지르는 이 전압 차이를 막전위라고 합니다. 포유류의 굵은 신경섬유에서 안정막전위는 약 −90mV이고, 훌륭한 실험 모델인 대왕오징어 축삭에서는 약 −60mV입니다.
네른스트 방정식은 막 양쪽에서 농도가 다른 단일 이온이 만드는 막전위를 계산하는 방법입니다. 예를 들어 25°C에서 K+의 세포 밖/안 농도가 20/400이면 네른스트 전위는 −75mV입니다. Na+의 비율이 440/50이면 +55mV입니다. 아래 수치는 대왕오징어 축삭막에서 관찰되는 값에 해당합니다.
| 이온 | 세포외액 ECF (mM) | 세포내액 ICF (mM) | 네른스트 전위 (mV) |
|---|---|---|---|
| K+ | 20 | 400 | −75 |
| Na+ | 440 | 50 | +55 |
| Cl− | 560 | 52 | −60 |
| A− | — | 385 | — |
ECF = 세포외액 · ICF = 세포내액 · mM = 리터당 밀리몰
막전위는 모든 이온의 영향을 합한 결과이며 골드만 방정식, 또는 골드만–호지킨–카츠 방정식으로 계산합니다. 이 식은 양이온 농도가 분자에 들어간다는 점에서 네른스트 방정식과 비슷하지만, 농도에 투과도를 곱해 전도도라고 불리는 항을 구합니다. K+의 상대적 투과도가 워낙 높으므로 식에서 K+가 지배적인 영향을 미칩니다. 그 결과는 K+의 네른스트 전위에 가깝고 실제 안정막전위도 이에 가깝습니다. 그러나 활동전위가 발생하여 축삭이 탈분극하면 전압 개폐성 Na+ 통로가 열립니다. 그동안 Na+ 투과도가 K+보다 훨씬 높아져 Na+ 항이 골드만 방정식을 지배하고, 막전위는 일시적으로 Na+의 네른스트 전위에 가까워집니다.
대왕오징어 축삭의 안정막전위 −60mV는 Cl−의 네른스트 전위와 같습니다. 실제로 Cl−는 다른 이온과 힘이 결정한 막전위에 맞추어 수동적으로 평형을 이루기 때문에 막전위를 계산할 때 골드만 방정식에서 제외할 수 있습니다.
막전위는 이른바 나트륨 펌프, 즉 막 효소 Na/K-ATPase에 의해 유지됩니다. 이 펌프는 ATP 한 분자를 사용해 Na+ 세 개를 세포 밖으로 내보내고 K+ 두 개를 안으로 들여와 결과적으로 양이온 하나를 밖으로 내보냅니다. 막전위 유지에 꼭 필요한 작용입니다.
나트륨 펌프가 작동하려면 세포막 안쪽에서 ATP와 Na+가, 바깥쪽에서 K+가 결합해야 합니다. 독성 물질 우아바인은 막 바깥쪽의 K+ 결합 부위에 달라붙어 펌프를 불활성화합니다. 펌프가 멈춰도 세포는 몇 시간 동안 막전위를 유지할 수 있지만, Na+가 서서히 안으로 새어 들어오고 K+가 밖으로 나가면서 몇 시간 뒤에는 막전위가 완전히 사라집니다. 마찬가지로 세포가 죽어 미토콘드리아에서 더 이상 에너지인 ATP를 만들 수 없으면 펌프도 멈춥니다. 따라서 정상적인 세포 내 K+/Na+ 비율은 생존성의 지표가 됩니다.
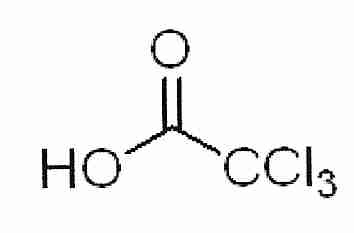
세포 내 K+/Na+ 비율은 크라이오닉스 연구에서 생존성을 평가할 때 가장 흔히 쓰이는 방법입니다. 앞으로는 세포 내 ATP 함량 같은 다른 방법도 유용할 수 있습니다. 이 비율을 측정할 때에는 조직을 만니톨에 넣어 세포외 이온을 씻어낸 뒤, 트라이클로로아세트산으로 세포막을 파괴하여 세포 내 이온을 방출시킵니다. 분광광도계로 세포 안의 나트륨과 칼륨의 상대 농도를 측정할 수 있습니다.
III. 어는 온도와 녹는 온도
순수한 물, 즉 균일한 물이 어는 온도가 녹는 온도보다 훨씬 낮다는 사실을 모르는 사람이 많습니다. 어는 온도와 녹는 온도 사이에 차이가 있으면 열 이력 현상이 나타납니다. 이 두 온도 사이의 구간에서는 이전에 어떻게 냉각하거나 가열했는지에 따라 결과가 달라질 수 있습니다.
수돗물이 녹는 온도인 0°C(Tm)에 가까운, 0°C 바로 아래에서 어는 이유는 물속의 불순물이 핵생성 물질로 작용하기 때문입니다. 고도 약 1~8마일의 구름에 떠 있는 작은 물방울은 −15°C 이하가 되어도 광물성 먼지 같은 핵생성 물질이 없으면 얼지 않을 수 있습니다. 구름이 흰 것은 우유와 마찬가지로 물방울의 크기가 가시광선의 파장과 대체로 비슷하기 때문입니다. 산란된 빛은 희게 보입니다.
완전히 순수한 물은 −5°C에서 좀처럼 얼지 않습니다. 그 온도에서는 얼음 결정이 자라려면 물 분자 45,000개로 이루어진 임계 크기의 결정핵이 먼저 만들어져야 하기 때문입니다. 분자가 그보다 적으면 융해열로 핵이 너무 따뜻해지고 주변 매질의 용해 효과도 커서 핵이 사라집니다. −20°C에서 순수한 물의 결정이 자라는 데 필요한 임계 핵의 크기는 물 분자 650개입니다. 사람이 다루는 부피와 시간 범위에서는 그렇게 많은 분자가 저절로 뭉치기 어렵습니다. 순수한 물은 약 −40°C, 즉 균일 핵생성 동결 온도(Th)에서 어는데, 이때에는 물 분자 70개만 모여도 성장 가능한 핵이 됩니다. 핵생성 과정에 관한 자세한 내용은 금속의 몇 가지 성질을 참조하십시오.
환경에 존재하는 생물학적 핵생성 물질은 물이 −40°C가 아니라 0°C 바로 아래에서 어는 가장 흔한 이유입니다. 요오드화은(AgI)이나 세균 단백질처럼 물이 아닌 핵을 중심으로 물의 핵이 자라면 불균일 핵생성이 일어나며, 물은 불균일 핵생성 동결 온도에서 얼게 됩니다. 식물에서 흔히 발견되는 Pseudomonas syringae 세균은 물의 동결 온도를 −2°C까지 높일 수 있습니다. 북극의 곤충이나 물고기 같은 여러 생물은 얼음 핵생성을 억제하여 불균일 핵생성 동결 온도를 낮추는 부동 단백질을 갖고 있습니다.
동결보호제를 첨가하면 물의 녹는 온도(Tm), 핵생성 물질이 없는 물의 동결 온도(Th), 그리고 이 둘 사이에 있는 불균일 핵생성 동결 온도가 모두 내려갑니다. 보호제를 충분히 넣으면 Th가 유리전이 온도 Tg까지 낮아집니다. 이때 물과 보호제의 혼합물은 얼음 결정으로 얼지 않고 유리 상태로 굳습니다 [CRYOBIOLOGY 21(4):407–426 (1984)]. 크라이오닉스에서 사용하는 동결보호제의 Tg는 일반적으로 약 −123°C입니다.
녹는 온도와 균일·불균일 핵생성 온도의 자세한 설명은 얼음 형성 억제제를 참조하십시오.
IV. 결합수와 자유수
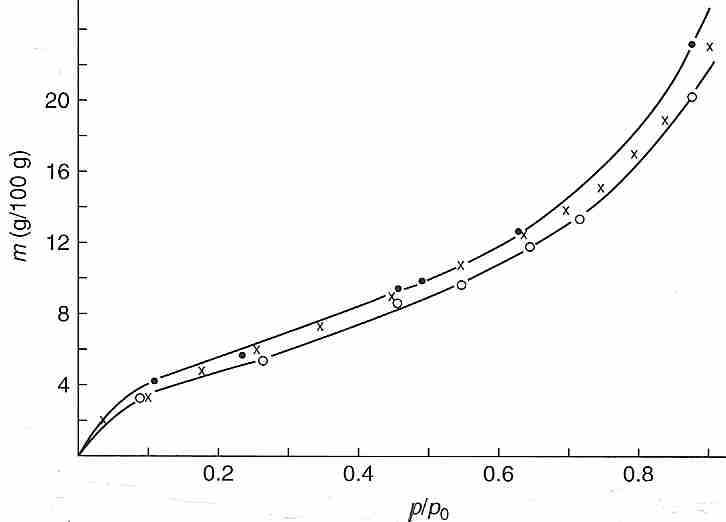
세포에 들어 있는 물의 적어도 90%는 ‘자유수’라고 부를 수 있습니다. 자유수는 얼 수 있고, 삼투압 변화에 반응하여 세포 밖으로 이동할 수도 있습니다. 예를 들어 세포 밖에 얼음이 생겨 용액이 고장성이 되었을 때 그렇습니다. 반면 세포 내 물의 약 10%는 결합수입니다. 이 물은 단백질, 핵산 또는 인지질의 극성 말단기처럼 큰 분자의 친수성 표면에 수소 결합으로 단단히 붙어 있거나, 그 표면에 직접 결합한 물 분자에 다시 강하게 결합해 있습니다 [ANNALS OF THE NEW YORK ACADEMY OF SCIENCES; Despa, F; 1066:1–11 (2005)]. 결합수는 세포외 동결이나 기타 원인으로 세포 밖이 고장성이 되어도 삼투 작용만으로 빠져나가지 않습니다. 진공 상태에서 가열해야 제거할 수 있습니다. 자유수를 제거하는 것은 탈수 손상을 일으키지 않지만 결합수를 제거하면 손상이 생깁니다. 결합수라는 보호층이 사라지면 거대분자들이 서로 화학적으로 반응하기 때문입니다.
결합수의 존재는 오븐에서 다양한 정도로 건조한 소의 헤모글로빈 위에서 25°C일 때 측정한 증기압(p)으로 실험적으로 보여줄 수 있습니다. 자연 상태의 헤모글로빈은 X, 변성된 것은 O로 표시합니다. 물 함량(헤모글로빈 100g당 물의 g 수)을 세로축에 놓고, 건조한 시료 위의 증기압과 순수한 물의 증기압의 비(p/po)를 비교하면, 물 함량이 약 20%(100g당 20g)를 넘을 때 증기압이 순수한 물과 거의 같아집니다(p/po > 0.8). 대부분의 물이 단백질에 결합하지 않은 자유수라는 뜻입니다. 물 함량이 약 10%이면 p/po는 순수한 물의 약 절반인 0.5로 떨어집니다. 남은 물이 단백질에 더 단단히 결합했다는 뜻으로 해석할 수 있습니다. 여러 단백질 용액에 대한 열량 측정에서도 물의 25~30%에는 융해 잠열, 즉 동결이 없다는 사실이 확인되었습니다. 이 물은 단백질에 결합한 물입니다. 결합수는 점성이 매우 높아 극저온에서 유리화됩니다. 냉각한 세포를 시차주사열량계(DSC)로 측정해도 세포 내 물의 적어도 10%는 얼 수 없는 것으로 나타납니다 [CRYOBIOLOGY; Schrenders, PD; 33(5):487–501 (1996); Sun, WQ; 38(4):372–385 (1999)].
V. 포접 수화물


물은 수많은 무기·유기 분자의 결정 속에 들어가 수화물을 만들 수 있습니다. 단백질 결정은 물이 약 50%인 경우가 흔합니다. 한편 비극성 분자나 단백질처럼 비극성 부분이 있는 극성 분자도 물과 이온 결합이나 수소 결합을 만들지 않고 물에 녹을 수 있습니다. 알라닌의 메틸기, 페닐알라닌의 벤질기, 발린의 아이소프로필기처럼 단백질에 있는 비극성 기는 물과의 친수성 상호작용 때문에 흔히 단백질 내부로 밀려 들어가며, 이것이 단백질 접힘에 관여합니다. 그럼에도 단백질의 비극성 기 가운데 거의 절반이 표면의 수화된 영역에 있을 수 있습니다. 온도가 내려가면 소수성 상호작용은 약해지고 수소 결합은 강해집니다.
물 분자는 비극성 ‘게스트 분자’를 둘러싸는 새장 같은 포접 수화물 구조를 만듭니다. 새장을 구성하는 물 분자끼리는 수소 결합을 하고, 물 분자와 새장 안의 게스트 분자 사이에는 반데르발스 상호작용이 일어납니다.
황화수소나 메탄 같은 기체는 특히 높은 압력에서 포접체의 형태로 수용액에 존재할 수 있습니다. 심해 해저에는 6조 톤이 넘는 메탄 포접 수화물이 있습니다. 메탄은 아이소프로필알코올처럼 보통 물에 녹는 알코올이 포접 수화물을 만들도록 돕는 ‘보조 분자’로도 작용합니다 [THE JOURNAL OF CHEMICAL PHYSICS; Alavi, S; 133(7):074505 (2010)]. 반대로 메탄올은 수화물 생성 억제제이며, 가스관의 흐름을 막는 수화물의 생성을 방지하는 데 쓰여 왔습니다. 다른 알코올은 온도와 압력에 따라 게스트 분자일 수도, 포접체 억제제일 수도 있습니다. 이는 게스트 분자의 산소와 새장 속 물 분자 사이의 수소 결합 때문입니다 [CHEMISTRY: A EUROPEAN JOURNAL; Alavi, S; 16(3):1017–1025 (2010); PHYSICAL CHEMISTRY CHEMICAL PHYSICS; Makiya, T; 12(33):9927–9932 (2010)].

게스트 분자를 둘러싼 다면체 포접체의 새장 모양은 얼음과 비슷하고 일정한 녹는점을 가진 결정성 구조입니다. 액체 물에서 만들어진 메탄 포접 수화물의 구조는 얼음 속의 구조와 사실상 같습니다. 이를 보여주듯 메탄이 액체 물에 들어갈 때의 용해열(ΔH°, −4621칼로리)은 얼음 속에 들어갈 때의 값(−4553칼로리)과 거의 같습니다. 포접체의 다면체 단위 셀은 면을 공유하면서 거시적인 결정 배열로 자랄 수 있습니다. 압력이 높아지면 수화물 결정의 형태가 변해, 수화물 막에서 액체 물 쪽으로 결정이 성장합니다 [CRYSTAL GROWTH & DESIGN; Ohmura, R; 5(3):953–957 (2005)]. 포접체는 게스트 분자를 제외하더라도 같은 수의 분자로 이루어진 육각형 얼음보다 부피가 큽니다. 따라서 생물학적 조직에서 포접체가 형성되면 단순 동결보다 기계적 손상이 클 수 있습니다. 반면 물이 순수한 얼음으로 분리되는 것을 막아, 크세논 같은 포접체는 높은 염분 농도로 인한 손상을 줄일 수도 있습니다.
크세논–질소를 100psi(6.8기압)로 처리한 생쥐 심장에 관한 논문은, 가압 산소–질소로 처리한 대조군과 비교했을 때 액체질소에 넣었던 심근세포의 전자현미경 사진이 양호하다고 보고합니다 [INTERNATIONAL JOURNAL OF CLINICAL AND EXPERIMENTAL PATHOLOGY; Sheleg, S; 1(5):440–447 (2008)]. 그 논문은 세포 안에서 만들어진 포접체가 동결 중 세포막을 넘어 밖으로 나갔을 물을 붙잡아 세포외 얼음의 양을 줄이고, 심근세포를 탈수 손상으로부터 보호한다고 제안합니다. 또한 크세논 포접체가 해동 과정의 재결정 손상으로부터 세포를 보호한다고 제안합니다. 뒤의 설명이 사실이라면 개선된 전자현미경 사진이 저온 보존 중 구조 보존의 개선을 보여주는 것은 아닙니다. 이 논문은 동결보호제 독성과 모호하게 언급된 다른 손상 원인, 어쩌면 탈유리화를 이유로 유리화를 비판하며, 그래서 비교용 유리화 시료를 만들지 않았다고 설명합니다. 유리화와 포접체 형성은 서로 양립할 수 없는 냉동보존 접근법입니다. 포접체는 얼음과 비슷한 구조이므로 유리화는 얼음 형성만큼이나 포접체 형성도 막을 것입니다. 크세논 포접체가 극저온에서 작은 조직 시료의 보존에는 유용할 수 있어도, 부피가 큰 포접체의 기계적 손상 때문에 극저온 장기 보존이나 크라이오닉스에는 적용할 수 없습니다.
2,3-부탄다이올은 여러 동결보호제보다 낮은 농도에서 유리화할 수 있는 강력한 동결보호제입니다. 그러나 이 물질의 메조 이성질체는 쉽게 결정화하는 수화물을 만들고 세포독성이 있습니다 [CRYOBIOLOGY; Sutton, RL; 29(5):585–598 (1992)]. 결정화 자체가 독성의 원인인지, 수화물이 얼음 핵생성을 촉진하는지는 아직 밝혀지지 않았습니다. 메조 이성질체가 없는 순수한 좌회전성 또는 우회전성 2,3-부탄다이올은 매우 비싸지만, 메조 이성질체가 4% 미만인 용액은 그만큼 비싸지는 않습니다.
VI. 동결보호제의 독성


글리세롤은 과산화수소 생성을 늘리고 [AMERICAN JOURNAL OF PHYSIOLOGY; Guidet, B; 257(3 Pt 2):F440–F445 (1989)], 일산화질소 방출을 증가시켜 [RENAL FAILURE; Chandler, V; 28(2):161–168 (2006)] 신부전을 일으킬 수 있습니다.
에틸렌글리콜은 글리콜알데하이드, 글리옥실산 및 옥살산으로 대사됩니다 [AMERICAN JOURNAL OF KIDNEY DISEASES; Poldelski, V; 38(2):339–348 (2001)]. 독성 대사산물은 신장 및 심폐 기능 부전을 일으킬 수 있습니다 [FORENSIC SCIENCE INTERNATIONAL; Leth, PM; 155(2–3):179–184 (2005)]. 글리콜알데하이드는 피부 손상과도 관련이 있습니다 [ARCHIVES OF TOXICOLOGY; Lockley, DJ; 79(3):160–168 (2005)]. 항산화제는 옥살산염과 옥살산칼슘에 노출된 신장 상피세포의 독성 영향을 줄이는 것으로 나타났습니다 [UROLOGICAL RESEARCH; Thamilselvan, S; 31(1):3–9 (2003)]. 신장 독성은 옥살산칼슘에 의해서만 생긴다고 주장하는 연구자도 있습니다 [TOXICOLOGY LETTERS; Guo, C; 173(1):8–16 (2005)]. 생쥐 난모세포에서는 칼슘을 제거하면 에틸렌글리콜 [MOLECULAR REPRODUCTION AND DEVELOPMENT; Takahashi, T; 68(2):250–258 (2004)], DMSO [REPRODUCTION; Larman, MG; 131(1):53–61 (2006)] 및 프로필렌글리콜 [HUMAN REPRODUCTION; Larman, MG; 22(1):250–259 (2007)]의 독성에 대응하는 효과가 있습니다.
하지만 저온생물학과 크라이오닉스에서 문제 삼는 동결보호제 독성은 고온에서 장기간 나타나는 전신적 영향, 특히 에틸렌글리콜의 간 대사산물에 의한 영향과는 다릅니다. 에틸렌글리콜 자체의 전신 독성은 낮습니다. 독성을 어떻게 측정하느냐에 따라 그 원인에 대한 설명도 달라집니다. K/Na 비율은 생존성 또는 독성을 평가하는 데 흔히 쓰입니다. 생존성이 낮으면 독성이 높다는 뜻입니다.
신장 절편에서는 일반적인 동결보호제 가운데 글리세롤의 독성이 대체로 가장 낮으며, 독성이 높은 순서는 다음과 같습니다.
폼아마이드 > 프로필렌글리콜 > DMSO > 에틸렌글리콜 > 글리세롤
폼아마이드를 제외하면 이는 이들 보호제의 유리화 능력이 강한 순서와 정확히 같습니다. 글리세롤은 보호 능력도 가장 약하고 독성도 가장 낮습니다 [CRYOBIOLOGY; Baudot, A; 40(2):151–158 (2000)]. 폼아마이드는 가장 독성이 크지만 유리 형성 능력은 가장 약합니다. 단독으로 유리화할 수는 없지만 다른 보호제의 유리화를 도울 수 있습니다. 폼아마이드 및 두 종류의 글리콜을 각각 DMSO와 섞으면 폼아마이드–DMSO 혼합물의 독성이 가장 낮습니다. DMSO가 폼아마이드의 독성을 크게 줄이며, 반대 방향의 효과도 있는 듯합니다. 다음 절에서 다시 설명합니다. 이 경우 독성 순서는 다음과 같습니다.
DMSO + 프로필렌글리콜 > DMSO + 에틸렌글리콜 > DMSO + 폼아마이드
여섯 종류의 보호제를 각각 30%(v/v)로 사용한 생쥐 배반포 연구에서는 에틸렌글리콜(EG)의 독성이 단연 가장 낮고 프로필렌글리콜(PG)은 거의 가장 높았습니다 [JOURNAL OF REPRODUCTION AND FERTILITY; Valdez, CA; 96(2):793–802 (1992)].
1,3-부탄다이올 > PG > 2,3-부탄다이올 > 글리세롤 > DMSO > EG
그러나 사람과 생쥐의 난모세포에서는 DMSO가 프로필렌글리콜보다 독성이 높을 수 있습니다 [HUMAN REPRODUCTION; Gook, DA; 8(7):1101–1109 (1993)]. 사람 내피세포에서는 2~4°C에서도 DMSO와 에틸렌글리콜이 프로필렌글리콜이나 2,3-부탄다이올보다 훨씬 독성이 높습니다 [CRYOBIOLOGY; Wusterman, MC; 44(1):24–37 (2002)].
반대로 완만하게 얼렸다가 회수한 물소 난모세포에서는 DMSO가 에틸렌글리콜이나 프로필렌글리콜보다 손상을 훨씬 덜 일으킵니다. 유리화된 물소 난모세포가 배반포로 발달할 가능성은 40% DMSO를 사용했을 때가 40% 에틸렌글리콜을 사용했을 때보다 약 40% 높았고, DMSO 20%와 에틸렌글리콜 20%를 함께 사용했을 때는 세 배 넘게 높았습니다 [REPRODUCTION, FERTILITY, AND DEVELOPMENT; Gautam, SK; 20(4):490–496 (2008)].
굴 배아에서도 DMSO는 프로필렌글리콜, 에틸렌글리콜 또는 아세트아마이드보다 독성이 낮습니다. DMSO와 아세트아마이드를 섞으면 어느 하나만 썼을 때보다 독성이 낮아집니다. 여기에 트레할로스를 넣으면 독성이 더 줄고 생존율은 높아집니다 [AQUATIC LIVING RESOURCES; Chao, N; 7(2):99–104 (1994)].
넙치 배아에 20% 농도의 동결보호제를 사용했을 때 독성이 높은 순서는 다음과 같습니다.
글리세롤 = 에틸렌글리콜 > DMSO > 다이메틸폼아마이드 > 프로필렌글리콜 > 메탄올
넙치 배아는 에틸렌글리콜이나 글리세롤에 노출되면 살아남지 못합니다 [THERIOGENOLOGY; Chen, SL; 63(4):1207–1219 (2005)]. 메탄올 5%를 첨가하면 글리세롤, DMSO, 프로필렌글리콜, 에틸렌글리콜의 독성이 뚜렷하게 감소했습니다 [THERIOGENOLOGY; Zhang, YZ; 63(3):763–773 (2005)].
제브라피시 배아를 10% 동결보호제 용액에 48시간 노출했을 때 독성이 높은 순서는 다음과 같습니다 [THERIOGENOLOGY; Lahnsteiner, F; 69(3):384–396 (2008)].
에틸렌글리콜 > 메탄올 > 프로필렌글리콜 > DMSO
보리새우류 배아에 대한 보호제 용액의 독성이 높은 순서는 다음과 같습니다.
글리세롤, 폼아마이드 > 프로필렌글리콜 > DMSO > 에틸렌글리콜 > 메탄올
상실배 단계에서는 글리세롤이 더 독성이 높았지만, 노플리우스 유생 단계에서는 폼아마이드가 더 독성이 높았습니다 [CRYOBIOLOGY; Newton, SS; 33:172–177 (1996)].
대장균 Escherichia coli에서는 다이에틸설폭사이드(DESO)의 독성이 DMSO나 글리세롤보다 상당히 낮았습니다 [CRYOBIOLOGY; Markarian, SA; 49(1):1–9 (2004)].
글리세롤 > DMSO > DESO
조류 Chlamydomonas reinhardtii에서는 생존성 지표로 측정한 광합성 활성이 DMSO 7.5%에서 약 25%로 떨어졌지만, 메탄올 7.5%에서는 거의 정상 수준이었습니다 [EUROPEAN JOURNAL OF PHYCOLOGY; Crutchfield, ALM; 34(1):43–52 (1999)].
생물종에 따라 DMSO와 글리세롤의 독성을 비교한 결과는 다양합니다. 수정 능력으로 평가하면 닭 정자에는 DMSO가 글리세롤보다 더 독성이 높습니다 [POULTRY SCIENCE; Tselutin, K; 78(4):586–590 (1999)]. 두 개의 편모를 가진 원생생물 Crypthecodinium cohnii는 DMSO보다 글리세롤에 노출된 뒤 훨씬 잘 자랍니다 [CRYOBIOLOGY; Simione, FP; 14(3):362–366 (1977)]. 이 원생생물에는 에틸렌글리콜이 극도로 독성이 높았습니다. 반면 나선균 Leptospira interrogans의 성장에는 DMSO 3%보다 글리세롤 2%가 더 큰 독성 영향을 미쳤습니다 [THE JOURNAL OF APPLIED BACTERIOLOGY; Palit, A; 61(5):407–411 (1986)]. 말라리아 기생충 Plasmodium chabaudi에도 글리세롤이 DMSO보다 독성이 높지만, 삼투압 효과와 실제 독성을 구별하기 어려워 비교가 복잡합니다 [CRYOBIOLOGY; Mutetwa, SM; 21(3):329–339 (1984)]. 회복 배지에 포도당을 넣자 두 보호제에 노출된 뒤의 회복률이 크게 개선되었습니다. 식물인 박하의 새순 끝에는 글리세롤 50% 용액이 글리세롤 30%·에틸렌글리콜 15%·DMSO 15% 혼합물보다 독성이 낮습니다 [CRYOBIOLOGY; Volk, GM; 52(2):305–308 (2006)].
메탄올과 폴리비닐피롤리돈(PVP)은 메탄을 이용하는 세균에 대해 글리세롤이나 DMSO보다 독성이 상당히 낮습니다 [LETTERS IN APPLIED MICROBIOLOGY; Green, PN; 14(4):158–162 (1992)]. 빠르게 냉각한 효모 Saccharomyces cerevisiae의 보존에서 메탄올과 에탄올이 다른 동결보호제보다 우수한 것은 독성이 낮아서가 아니라 막 투과성을 높이기 때문으로 설명됩니다 [CRYOBIOLOGY; Lewis, JG; 31(2):193–198 (1994)].
절대 농도를 같게 놓고 독성을 비교하는 대신, 내피세포가 유리화하는 데 필요한 농도에서 독성을 비교할 수도 있습니다. 2,3-부탄다이올은 32%(w/w)만으로 내피세포를 유리화하지만 DMSO, 에틸렌글리콜, 프로필렌글리콜은 45%(w/w)가 필요합니다. 이 유리화 농도에서 내피세포 독성을 비교하면 다음과 같습니다.
DMSO(45%) = 에틸렌글리콜(45%) > 프로필렌글리콜(45%) = 2,3-부탄다이올(32%)
따라서 평소 가장 독성이 높다고 여겨지는 2,3-부탄다이올도 이 조건에서는 DMSO나 에틸렌글리콜보다 내피세포 독성이 낮습니다 [PHYSICS IN MEDICINE AND BIOLOGY; Robinson, MP; 47(13):2311–2325 (2002)]. 2,3-부탄다이올을 3.0M에서 2.0M로 낮추면 내피세포 손실이 35분의 1로 줄지만, DMSO를 같은 몰농도만큼 낮추면 손실은 3분의 1로 줄어듭니다 [CRYOBIOLOGY; Bourne, WM; 31(1):1–9 (1994)].
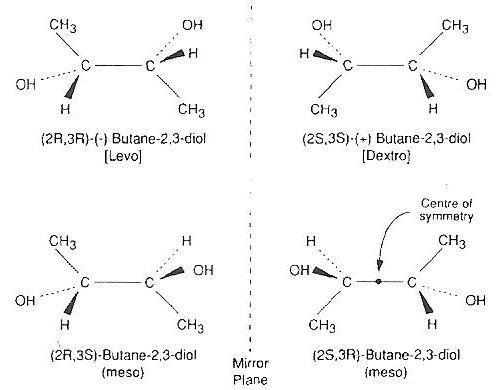
2,3-부탄다이올에는 명목상 네 가지 이성질체가 있지만, 그중 두 개는 서로 동일한 메조 이성질체입니다. 이들은 쉽게 결정화하고 세포독성이 있는 수화물을 만듭니다 [CRYOBIOLOGY; Sutton, RL; 29(5):585–598 (1992); ORGANOGENESIS; Taylor, MJ; 5(3):155–166 (2009)]. 메조 이성질체가 전혀 없는 순수한 좌회전성·우회전성 2,3-부탄다이올은 대부분의 용도에서 감당하기 어려울 만큼 비쌉니다. 광학활성, 즉 비메조 이성질체가 96.7%인 2,3-부탄다이올 30% 용액에 트레할로스나 자당을 4% 넣으면 독성이 크게 줄고 필요한 냉각 속도도 절반이 됩니다 [CRYOBIOLOGY; Bouton, P; 31(4):367–373 (1994)]. 다만 당류 4%를 넣어 냉각 속도를 줄이는 효과는 2,3-부탄다이올을 4% 더 넣는 효과의 약 절반에 불과합니다 [CRYOBIOLOGY; Baudot, A; 33(3):363–375 (1996)]. 유로콜린스 같은 운반 용액도 독성을 줄이고 유리 형성 능력을 높일 수 있습니다.
많은 저온생물학자는 세포·조직·장기·생물마다 독성의 법칙이 다르다는 듯 자신의 전문 분야에만 집중합니다. 그러나 기전을 가장 깊이 이해하려면 동결보호제 독성에 대한 통일된 이론을 찾을 수 있어야 합니다. 식물, 난모세포, 물고기 배아도 포유류의 장기와 마찬가지로 단백질, 지질, 탄수화물 및 핵산으로 이루어져 있습니다. 여러 생물과 조직을 연구해야 동결보호제 독성에서 무엇이 일반적이고 무엇이 특수한지 가장 잘 알 수 있습니다. 궁극적으로 이는 동결보호제가 단백질, 지질, 탄수화물, 핵산 및 물과 어떻게 상호작용하는지, 또 보호제끼리 어떻게 상호작용하는지의 문제입니다.
동결보호제를 점도가 높은 순서로 나열하면 다음과 같습니다.
글리세롤 > 프로필렌글리콜 > 에틸렌글리콜 > DMSO
좋은 보호제 혼합물은 점도와 독성이 낮고 유리화 능력은 좋아야 합니다. 점성이 높은 보호제로 인해 효소 활성이 떨어졌다는 사실을 곧바로 독성으로 해석해서는 안 됩니다 [BIOLOGICAL PROCEDURES ONLINE; Uribe, S; 5(1):108–115 (2003)].
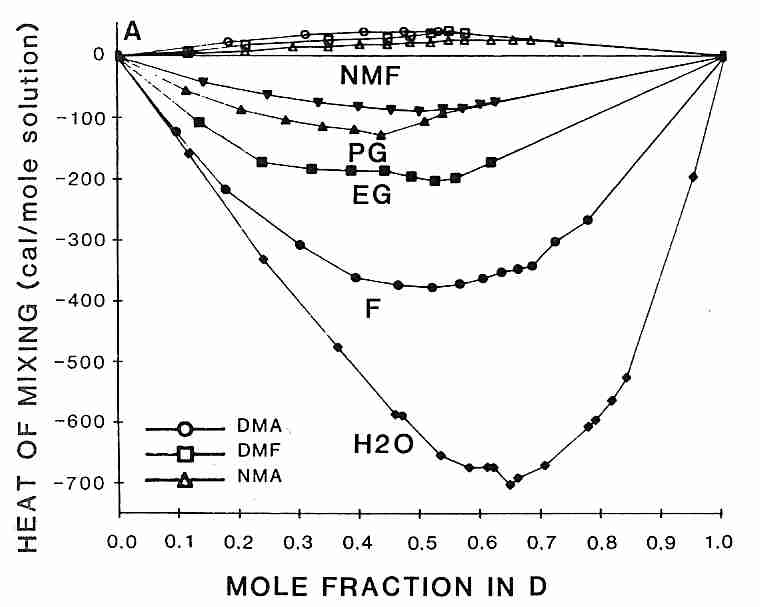
글리세롤·에틸렌글리콜·프로필렌글리콜 등의 폴리올과 달리 DMSO의 독성은 다른 동결보호제와 섞어 줄일 수 있습니다. 흥미롭게도 DMSO를 다른 보호제와 섞을 때 발생하는 열의 크기 순서는 DMSO 독성을 줄이는 효과의 순서와 같습니다 [CRYOBIOLOGY; Fahy, GM; 24(3):196–213 (1987)].
폼아마이드 > 에틸렌글리콜 > 프로필렌글리콜 > N-메틸폼아마이드
DMSO와 더 강하게 결합할수록 그 독성을 더 줄이기 때문일 것입니다. 폴리올을 메틸화하면 유리 형성 능력이 높아지는 한편, 하이드록실기의 수소 결합이 강해져 독성도 높아집니다 [JOURNAL OF PHYSICAL CHEMISTRY; Forsyth, M; 94:6889–6893 (1990)].
동결보호제는 세포막을 통과하는 속도가 서로 다를 뿐 아니라 물 분자가 막을 통과하는 속도도 바꿉니다. 글리세롤과 프로필렌글리콜이 사람 정자막을 통과하는 속도는 DMSO보다 거의 3분의 2 정도 빠르지만, 정자막을 통과하는 물의 확산은 글리세롤이나 DMSO보다 프로필렌글리콜을 사용할 때 거의 3분의 2 정도 빠릅니다 [BIOLOGY OF REPRODUCTION; Gilmore, JA; 53(5):985–995 (1995)].
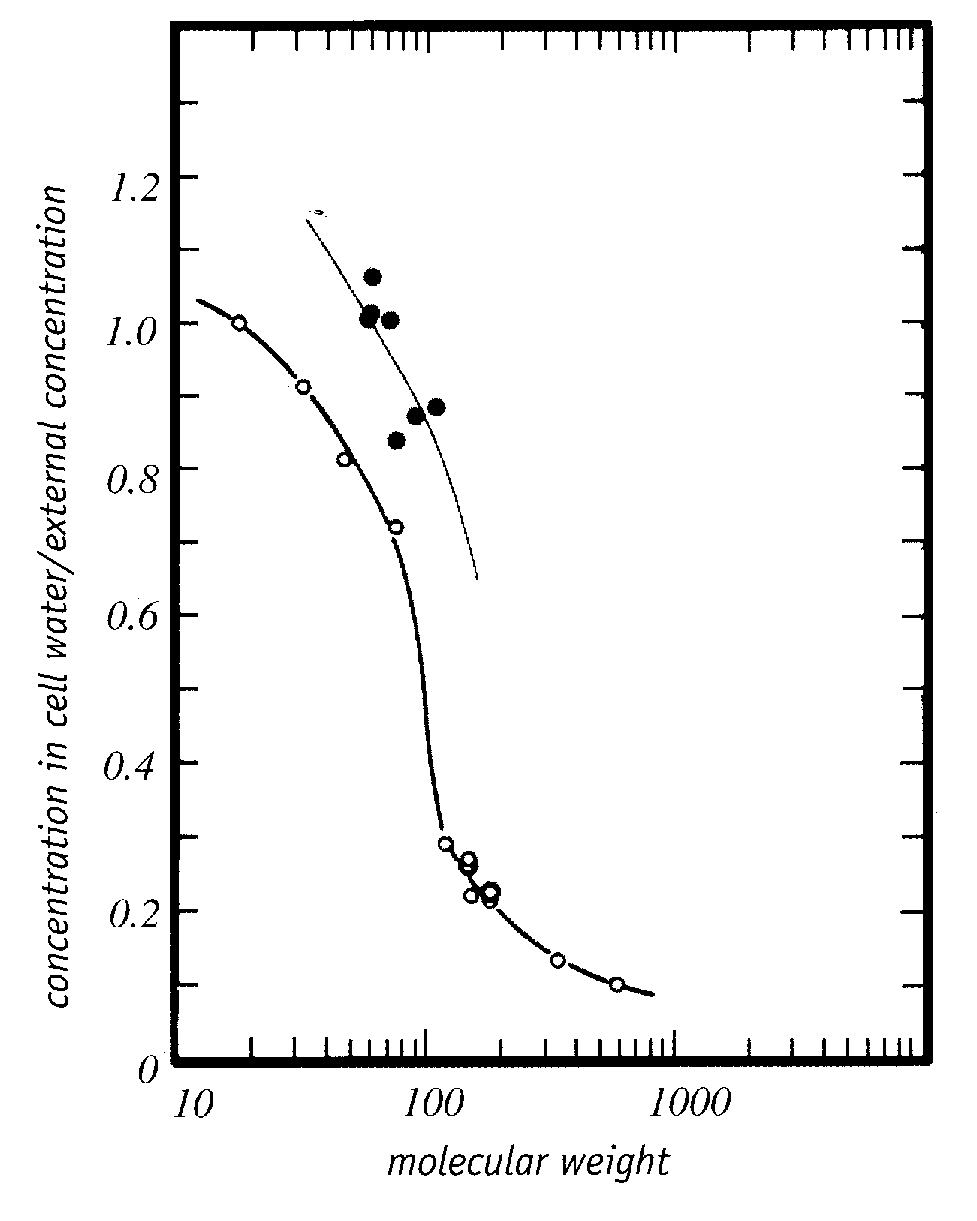
트레할로스는 독성이 없는 당류 동결보호제입니다. 결합수를 밀어내고, 단백질 및 인지질의 극성 말단에 결합수보다 더 강하게 수소 결합하여 세포막을 보호합니다 [ARCHIVES OF BIOCHEMISTRY AND BIOPHYSICS 245(1):134–143 (1986)]. 독성이 있는 동결보호제도 같은 방식으로 탈수 손상을 막을 수 있지만, 수소 결합이 더 약한 트레할로스와 달리 단백질을 변성시킬 수 있습니다. 좋은 동결보호제는 단백질 표면에서 우선적으로 배제되어 단백질을 안정화하고 펼쳐지거나 변성되는 것을 막는다는 증거가 있습니다 [ADVANCED DRUG DELIVERY REVIEWS; Arakawa, T; 46(1–3):307–326 (2001)]. 그런 보호제는 막을 쉽게 통과할 만큼 소수성이면서, 물과 잘 섞일 만큼 친수성일 것입니다. 실제로 보호제는 분자량만으로 예상한 것보다 세포막을 훨씬 쉽게 통과합니다 [PHYSIOLOGICAL CHEMISTRY AND PHYSICS AND MEDICAL NMR 25:177–208 (1993), 그림 5]. 독성이 낮은 보호제는 물과의 수소 결합보다 얼음 형성에 대한 총괄성 간섭을 통해 더 많이 작용할 수 있습니다.
VII. 동결보호제 독성의 기전
동결보호제의 독성을 일으키는 분자 수준의 기전을 이해하면 독성을 줄이는 방법을 찾는 데 중요한 진전이 될 것입니다. 보호제마다 독성을 나타내는 방식은 다르지만, 냉동보호 능력과 관련된 공통된 독성 특성도 있는 듯합니다. 경우에 따라 보호제 독성이 삼투압 손상과 혼동되기도 합니다. 보호제와 운반 용액은 삼투압 손상, 저온 손상, 단백질 손상, 냉각과 보호제 투여 과정에서 생길 수 있는 여러 세포 소기관 및 조직의 손상을 막아야 합니다. 어떤 생존성 검사를 사용하느냐도 독성 평가 결과에 영향을 미칩니다.
알칸올(−OH기 하나를 가진 알케인), 알케인다이올(−OH기 두 개를 가진 알케인), 글리세롤(−OH기 세 개)에 의한 적혈구 용혈 연구에서는 사용한 보호제와 무관하게 용혈 정도가 거의 전적으로 적혈구의 형태 변화에 달려 있었습니다. 용액과 막의 소수성 차이가 작을수록 용혈과 형태 변화가 컸습니다. 알칸올은 주로 막의 소수성에, 알케인다이올은 주로 용액의 소수성에 영향을 미쳤습니다. 탄소 사슬이 길수록 용혈은 늘었지만, 하이드록실기를 추가하여 대응하는 알칸올을 알케인다이올로 만들면 용혈은 줄었습니다. 20°C에서 100% 용혈을 일으킨 농도도 4°C에서는 5~10%의 용혈만 일으켰습니다. 연구자들은 폼아마이드가 DMSO 독성을 낮추는 효과가 두 물질이 용액의 소수성에 서로 반대되는 영향을 주기 때문일 수 있다고 제안했습니다 [BIOCHIMICA ET BIOPHYSICA ACTA; Bakaltcheva, IB; 1280(1):73–80 (1996)]. DMSO와 에틸렌글리콜을 섞었을 때 독성이 낮아지는 현상에도 같은 기전이 작용할 수 있습니다 [REPRODUCTION, FERTILITY, AND DEVELOPMENT; Gautam, SK; 20(4):490–496 (2008)].
이 적혈구 연구만 보면 메탄올의 독성이 가장 낮을 것 같습니다. 그러나 물고기 난모세포 연구에서는 메탄올 농도가 6M을 넘으면 단백질 손상이나 단백질 분해가 나타났고, 그보다 낮을 때는 나타나지 않았습니다 [CRYOBIOLOGY; Lubzens, E; 53(3):398–399, 초록 73 (2006)]. 메탄올은 소수성이 매우 강하고 동결보호 능력은 약합니다.
동결보호제의 독성과 세포막 단백질의 불안정화 사이에 상관관계가 발견되었습니다 [PHARMAZIE; Ivanov, IT; 56(10):808–809 (2001)]. DMSO는 물을 밀어내는 등의 방식으로 세포막을 교란합니다 [BIOCHIMICA ET BIOPHYSICA ACTA; Westh, P; 1664(2):217–223 (2004)]. DMSO는 온도가 높을수록 소수성이 커지므로 낮은 온도에서는 막의 탈수와 독성이 줄어듭니다 [BIOPHYSICAL JOURNAL; Sum, AK; 85(6):3636–3645 (2003)]. 5°C 이상에서 폼아마이드를 더하면 DMSO에 의한 막 교란은 줄어들기는커녕 약간 증가했습니다 [BIOCHIMICA ET BIOPHYSICA ACTA; Anchordogny, TJ; 1104(1):117–122 (1992)]. DMSO는 설프하이드릴기를 산화시키며, 온도가 낮아지면 이 효과는 감소할 것으로 예상됩니다 [BIOCHEMICAL AND BIOPHYSICAL RESEARCH COMMUNICATIONS; Snow, JT; 64(1):441–447 (1975)]. DMSO, 글리세롤, 특히 프로필렌글리콜은 효소 없이도 반응하여 독성을 띨 수 있는 포름알데하이드를 만들 수 있습니다 [HUMAN REPRODUCTION; Karran, G; 11(12):2681–2686 (1996)]. 고농도와 20°C 이상의 온도에서는 DMSO, 폼아마이드 및 메탄올이 DNA를 용해하는 것으로 나타났습니다 [BIOTECHNOLOGY AND BIOENGINEERING; Bonner, G; 68(3):339–344 (2000)].
동결보호제의 고농도 용액, 즉 용해도 한계에 가까운 용액에 녹인 라이소자임 효소를 분광 분석한 결과, 다이메틸폼아마이드(DMF), DMSO 및 폼아마이드에서는 구조가 완전히 사라졌습니다. 다른 보호제에서는 글리세롤, 에틸렌글리콜, 메탄올 순으로 일부 구조가 유지되었습니다 [BIOTECHNOLOGY AND BIOENGINEERING; Knubovets, T; 63(2):242–248 (1999)]. 서모라이신 효소를 80°C에서 20분간 DMF 50%에 넣으면 95%가 불활성화되지만 같은 조건의 DMSO 50%에서는 10%만 불활성화됩니다. 글리세롤 20%를 첨가하면 DMF에 의한 불활성화가 90%로 줄고, 트레할로스를 첨가하면 불활성화가 80% 줄어듭니다 [JOURNAL OF BIOTECHNOLOGY; Pazhang, M; 127(1):45–53 (2006)]. 박하 새순 끝에서는 자당이 22°C에서 에틸렌글리콜과 DMSO의 독성을, 0°C에서는 글리세롤의 독성을 줄입니다 [CRYOBIOLOGY; Volk, GM; 52(2):305–308 (2006)]. DMSO 10% 용액에 트레할로스 5%를 넣으면 제대혈 유핵세포의 생존율이 세포 종류에 따라 7%에서 25%로 높아지는 것으로 나타났습니다 [TRANSFUSION; Zhang, XB; 43(2):265–272 (2003)].
동결보호제 독성은 단백질 변성 때문에 생길 수 있습니다. 이를 ‘단백질 변성 가설’이라고 합니다 [CRYOBIOLOGY; Arakawa, T; 27:401–415 (1990)]. 그러나 유리화와 관련된 온도와 보호제 농도에서는 일반적으로 단백질이 변성되지 않는다는 증거도 있습니다 [CRYOBIOLOGY; Fahy, G; 27:247–268 (1990)].
최근 연구는 낮은 농도에서 가장 강한 보호 효과를 보이는 물질이 왜 가장 독성이 높은지에 대한 단서를 제공합니다. 신장 절편에서 유리화 능력이 가장 강한 보호제는 물과 가장 강하게 수소 결합하여 얼음의 바탕이 되는 물 분자 사이의 수소 결합을 방해합니다 [CRYOBIOLOGY 48(1):22–35 (2004); 48(2):157–178 (2004)]. 그러나 같은 물질은 단백질과도 가장 강하게 수소 결합하여 단백질을 펼치고 효소를 변성시킬 수 있습니다. 독성이 낮은 보호제는 약한 수소 결합으로 얼음 형성을 막지만, 더 중요한 작용은 얼음 형성에 대한 총괄성 간섭입니다. 이런 이유로 유로콜린스 용액에 DMSO 3.1M, 폼아마이드 3.1M 및 프로필렌글리콜 2.2M을 넣은 VS55, 즉 VS41A의 프로필렌글리콜을 에틸렌글리콜로 바꾼 것이 장기 냉동보존의 큰 진전이 되었습니다.
강하게 수소 결합하는 보호제의 높은 독성은 단백질 변성 가설로 설명할 수 있습니다. 한편 ‘탈수 손상 가설’은 독성이 강한 보호제가 물 분자와 결합하여 물이 단백질과 다른 거대분자를 적절히 수화하지 못하게 함으로써 탈수 손상을 일으킨다고 설명합니다. 그러나 이 설명에 반하는 증거가 많습니다. 탈수 손상은 결합수가 제거될 때에만 생깁니다. 결합수의 점도는 자유수보다 20~100배 높습니다. 단백질이 많은 탈수 세포는 보호제가 없어도 결합수 덕분에 유리화할 수 있습니다. 낮은 농도에서 독성이 큰 강력한 보호제라도 수소 결합할 자유수는 충분히 있습니다. 보호제 분자가 결합수 분자 하나와 결합한다면 자유수 분자가 즉시 그 자리를 채울 것입니다.
최근까지 동결보호제 독성을 예측할 방법은 없었습니다. 독성이 낮고 유리화 능력이 높은 혼합물을 만드는 일은 무작위 시행착오에 가까웠습니다. 하지만 그레고리 M. 페이히 박사와 브라이언 와우크 박사가 발명자로 기재된 미국 특허 6,395,467호에서는 qv*라는 지표를 사용하여, 유리화에 필요한 농도에서 분자의 극성 기 수와 관련된 독성을 수량화합니다. 먼저 다음과 같이 정의합니다.
q = MW / MPG = 물의 몰수 / 세포막을 통과하는 동결보호제의 극성 기 몰수
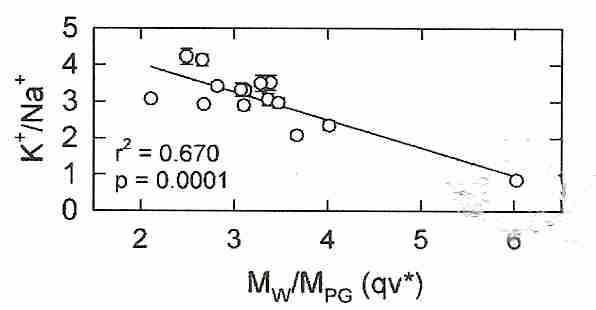
qv*는 독성을 조절하는 데 사용할 수 있습니다. 여기서 v는 유리화에 필요한 농도 Cv를 뜻합니다. 별표(*)는 용액 5~10mL를 분당 약 10°C로 유리전이 온도 Tg까지 냉각하는 표준 조건을 뜻합니다. 극성 기의 몰수 MPG는 간단히 세어 구합니다. 예를 들어 글리세롤의 하이드록실기는 세 개, 에틸렌글리콜은 두 개, DMSO의 극성 기인 설피닐기는 한 개입니다. 독성과 유리 형성 능력은 qv*에 대해 선형적으로 변합니다. 대부분의 보호제에서 qv*는 2~4 사이이지만 DMSO는 약 6입니다. v와 *는 q의 표준 조건을 나타내며 q에 곱하는 수가 아닙니다. qv*를 최소화하면 독성을 최소화하면서 유리화할 수 있습니다.
프로필렌글리콜과 폼아마이드에는 극성 기가 두 개씩 있습니다. 극성 기가 적은 보호제는 q가 크며 qv*도 클 가능성이 있습니다. qv*가 큰 용액은 물 분자 하나당 더 적은 극성 기로 유리화하므로 물과 더 강하게 수소 결합할 가능성이 있고, 강한 수소 결합은 더 높은 독성을 뜻합니다. 혼합물에서 qv*는 평균적인 수소 결합 강도를 나타냅니다. qv*가 클 때 나타나는 독성은 단백질, 막과 다른 세포 생체분자를 수화할 수 있는 물이 줄기 때문이라는 설명이 제시되었습니다.
직관적으로는 적은 농도로 강하게 유리화하는 물질이 조직에서 밀어내는 물과 보호제 총량이 적으므로 독성도 가장 낮으리라고 생각하기 쉽습니다. 하지만 qv* 개념은 세포막을 통과하는 보호제 가운데 유리화에 가장 높은 농도가 필요하고 물을 가장 많이 밀어내는 물질이 실제로는 가장 독성이 낮다는 사실을 보여주었습니다. 에틸렌글리콜은 프로필렌글리콜보다 유리화에 더 높은 농도가 필요하지만, 유리화 농도 Cv에서는 독성이 낮습니다. 특허 발명자들은 약하게 수소 결합하는 보호제의 농도가 높아 물의 농도가 낮아지더라도, 남은 물은 보호제와의 결합을 더 쉽게 끊고 생존에 중요한 분자를 수화할 수 있다고 추정했습니다. 아마이드류는 qv*를 낮춰 유용하지만 qv*와 무관한 독성도 있습니다. 이 독성은 DMSO의 독성에 단순히 더해지지 않습니다 [CRYOBIOLOGY 27:247–268 (1990); 48(1):22–35 (2004)]. 계산 예시는 부록에 있습니다.
21세기 의학(21st Century Medicine, 21CM) 연구자들은 여러 보호제를 섞었을 때 독성을 가장 적게 하면서 잘 유리화하는 결과를 얻었습니다. 대부분의 보호제, 특히 아마이드류는 DMSO와 함께 사용하면 DMSO의 독성을 줄일 수 있습니다. 21CM의 G. M. 페이히 박사가 거의 10년 동안 사용한 가장 효과적이고 독성이 낮은 용액은 VS4(유리화 용액 4)였습니다. DMSO 14%(w/v), 폼아마이드 14%(w/v), 프로필렌글리콜 11%(w/v), 콜로이드 10%(w/v)로 이루어졌습니다 [TRANSPLANTATION 70(1):51–57 (2000)]. 다만 이 혼합물은 1,000기압에서만 유리화됩니다. 프로필렌글리콜을 약 17%(w/v)로 늘리면 1기압에서 유리화할 수 있어 수정된 용액을 VS41A라고 불렀습니다. 프로필렌글리콜을 메톡시화 화합물로 바꾸자 생존성이 원래 용액보다 조금 높았지만 통계적으로 유의하지 않았고 재현되지도 않았습니다. 그러나 프로필렌글리콜을 에틸렌글리콜로 바꾸자 생존성이 뚜렷하게 높아졌습니다. 새 혼합물을 Veg, 즉 에틸렌글리콜을 사용한 VS41A라고 부릅니다.
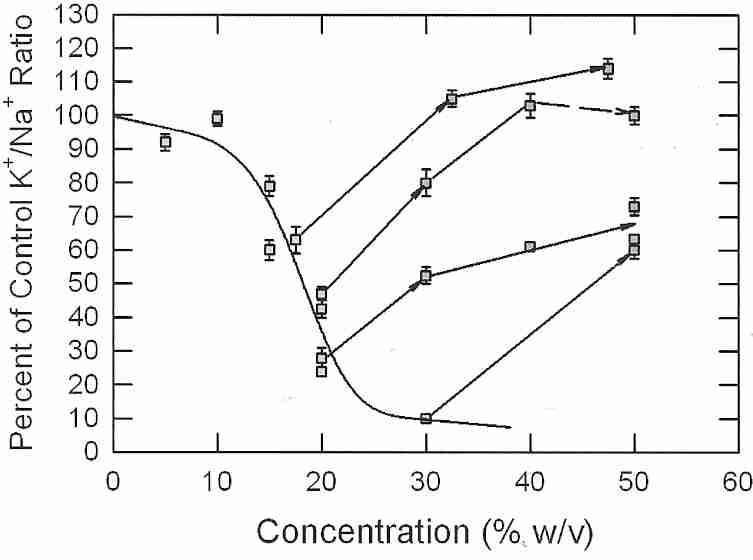
거의 20년 동안 폼아마이드가 DMSO의 독성을 낮춘다고 여겼지만, 1990년에는 오히려 DMSO가 폼아마이드의 독성을 낮춘다는 증거로 이 견해가 수정되었습니다 [CRYOBIOLOGY; Fahy, GM; 27:247–268 (1990)]. 0°C에서 신장 피질 절편에 폼아마이드를 더 많이 첨가할수록 생존성이 감소합니다. 그러나 폼아마이드 15%와 20%에 DMSO를 넣으면 신장 절편의 생존성이 거의 100%로 높아집니다. 많은 세포와 조직에서 0°C일 때 DMSO는 30%까지 독성이 없으므로, DMSO가 폼아마이드의 독성을 줄일 뿐 아니라 폼아마이드도 DMSO의 독성을 줄인다고 생각하는 것은 잘못일 수 있습니다.
일반적으로 보호제 혼합물은 단일 보호제 용액보다 독성이 낮습니다. 사람 관절 연골세포에서는 폼아마이드가 단독으로 가장 독성이 컸지만, 다른 보호제와 혼합했을 때 독성을 줄이는 효과는 시험한 물질 중 프로필렌글리콜이 가장 작았습니다 [CRYOBIOLOGY; Almansoori, KA; 64(3):185–191 (2012)].
폴리비닐피롤리돈, 폴리에틸렌글리콜 같은 고분자 중합체나 자당처럼 세포 안으로 들어가지 않는 보호제를 더하면, 침투성 보호제의 농도와 독성을 낮출 수 있습니다. 비침투성 보호제는 세포 안으로 확산되기에는 너무 크지만, 세포외 공간의 물을 유리화하고 탈유리화를 억제하는 데 도움이 됩니다. 탈수로 세포의 물이 세포외 공간으로 나가고 세포 안에는 자연적으로 유리화를 돕는 단백질이 있으므로, 세포 안에 필요한 보호제의 양은 세포 밖보다 적습니다. 특허 6,395,467호는 ① qv*를 기준으로 고른 침투성 보호제, ② 비침투성 보호제, ③ 얼음 형성 억제제를 적절히 사용하여 독성을 최소화하면서 유리화를 최적화한다고 설명합니다.
21CM 연구자들은 Veg에 얼음 형성 억제제와 다른 보호제의 적절한 혼합물을 더해 M22라는 용액을 만들었습니다. 이 이름은 −22°C에서 생체 시료에 이 혼합물을 도입하려는 의도에서 왔습니다. M22를 이용해 토끼 신장을 −135°C에서 유리화한 뒤 다시 데워 다른 토끼에게 이식했으며, 이 신장은 유일하게 기능하는 신장으로서 그 토끼의 생명을 유지했습니다 [ORGANOGENESIS; Fahy, GM; 5(3):167–175 (2009)]. 에틸렌글리콜은 1,3-프로판다이올보다 유리를 더 잘 형성합니다 [CRYOBIOLOGY; MacFarlane, DR; 27:345–358 (1990)]. qv* 모델에 따르면 독성도 더 낮을 것으로 예상되지만, 발표된 qv* 연구에서 직접 시험한 물질에는 포함되지 않았습니다 [CRYOBIOLOGY 48(1):22–35 (2004)]. 에틸렌글리콜을 1,3-프로판다이올이나 두 물질의 혼합물로 대체하면 프로필렌글리콜을 에틸렌글리콜로 대체했을 때처럼 추가 이점이 있을 수도 있습니다. 다만 1,3-프로판다이올은 분자가 더 커서 조직에 에틸렌글리콜만큼 쉽게 침투하지 못할 수 있습니다.
일반적으로 보호제 독성은 온도가 낮을수록 작아지며 충분히 낮은 온도에서 도입할 수 있다면 무시할 만한 수준이 될 수도 있습니다. 크라이오닉스 인스티튜트에서는 뇌를 관류할 때 먼저 에틸렌글리콜을 도입합니다. 그러면 동결 없이 영하 온도에 도달한 뒤 DMSO·에틸렌글리콜 혼합물을 도입할 수 있습니다. 에틸렌글리콜은 DMSO의 독성도 낮춥니다.
한 연구에서는 사람의 체온인 37°C에서 난모세포를 DMSO에 30분 노출하면 수정 능력이 크게 감소했지만, 4°C에서는 감소하지 않았습니다 [HUMAN REPRODUCTION; Pickering, SJ; 6(1):142–143 (1991)]. 사람 신생아의 피부 섬유아세포를 대상으로 한 비슷한 연구에서는 37°C에서 DMSO 17%(v/v)에 20분 노출하면 생존성이 50% 떨어졌지만, 4°C에서 20분 동안 같은 감소를 일으키려면 DMSO 37%(v/v)가 필요했습니다 [CRYOBIOLOGY; Wang, X; 55(1):60–65 (2007)]. 안타깝게도 낮은 온도에서는 보호제의 점성이 커져 조직에 확산되는 능력이 떨어집니다. 따라서 독성이 낮아지는 이점과 낮은 온도에서 조직을 포화시키기 위해 노출 시간을 늘려야 하는 문제 사이에 절충이 필요합니다.
크라이오닉스에서 동결보호제 독성은 얼마나 중요할까요? 미래 기술로 변성된 단백질을 쉽게 교체할 수 있을까요? 효소는 교체하기 쉬울 것이며, 변성된 막단백질이 충실한 재구성을 막을 정도의 구조 손상을 일으키지는 않을 수 있습니다. 그래도 크라이오닉스를 위한 저온생물학 연구는 가능한 한 손상을 적게 일으켜 미래 기술에 대한 의존을 줄이는 것을 목표로 해야 합니다. 손상이 줄수록 복구 불가능한 손상, 즉 파괴가 일어날 가능성도 낮아집니다.
동결보호제의 특성에 관한 추가 논의는 글리세롤 이외의 동결보호제를 이용한 유리화를 참조하십시오.
VIII. 세포막과 탈수 손상


세포와 미토콘드리아, 핵, 리소좀 등의 세포 소기관을 둘러싼 막은 주로 단백질과 콜레스테롤을 포함한 인지질 이중층으로 이루어져 있습니다. 세포를 둘러싼 세포막에는 바깥 표면에 탄수화물이 붙은 단백질인 당단백질도 있습니다. 인지질에는 인산염과 염기로 이루어진 친수성, 즉 물을 좋아하는 비지질성·대전성·극성의 ‘머리’가 있고, 지방산으로 이루어진 소수성, 즉 물을 싫어하는 지질성·비대전성·비극성의 ‘꼬리’도 있습니다. 글리세롤 ‘골격’이 머리와 꼬리를 연결합니다. 예를 들어 레시틴(포스파티딜콜린)에서는 글리세롤 및 이에 붙은 지방산이 인산염 분자 및 인산염에 붙은 콜린 염기와 연결됩니다. 다시 말해 인지질에서는 인산기에 결합한 글리세롤 분자가 친수성 염기와 소수성 지방산 두 개를 잇습니다. 인지질 이중층의 친수성 머리는 물과 수소 결합할 수 있도록 바깥쪽과 안쪽 표면을 향하고, 소수성 꼬리는 막 내부를 향해 반데르발스 힘으로 서로 끌어당깁니다.
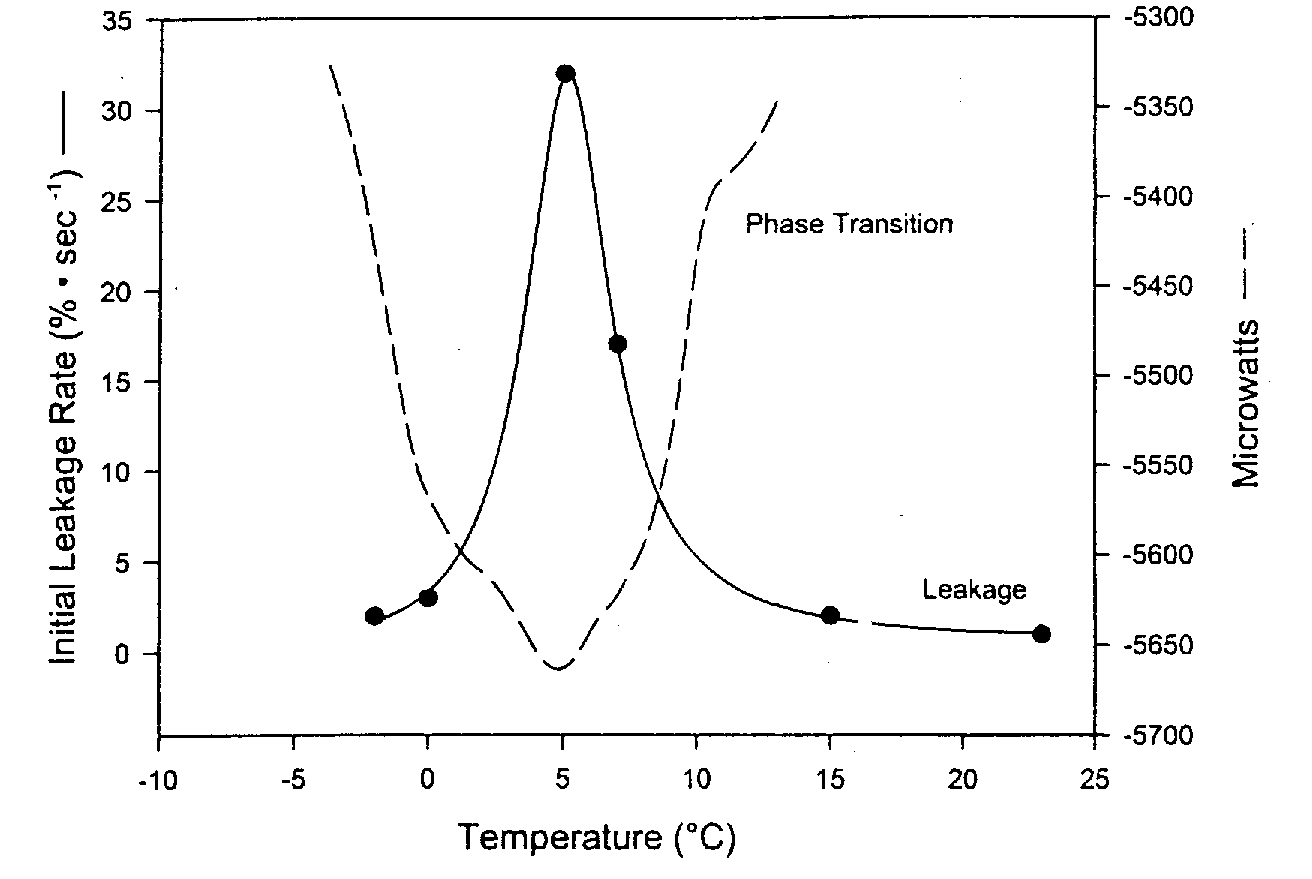
인지질 이중층 막은 인지질이 수직으로 정렬되어 결정처럼 보이므로 액정이라고 불립니다. 그러나 지질 사슬은 느슨하고 막 속 단백질은 옆으로 움직이거나 막의 평면에 수직인 축을 중심으로 회전할 수 있으므로 ‘액체’이기도 합니다. 이 액체상과 달리, 이중층은 꼬리의 지질 사슬이 더 단단하고 질서정연하며 촘촘하게 채워진 고체에 가까운 ‘겔상’을 이룰 수도 있습니다. 이 변화를 열방성 상전이라고 하며, 프라이팬의 기름이 굳는 현상과 비슷합니다. 고체 얼음이 녹아 액체 물이 되는 상전이에 빗대어 열방성 상전이가 일어나는 온도도 녹는 온도 Tm이라고 부릅니다. 그림의 예에서는 0~10°C 범위입니다.
온도를 낮추거나 높일 때 막의 액체 부분과 겔 부분 사이의 경계에서 배열에 결함이 생기므로 상전이 온도에서 막 손상과 누출이 가장 큽니다. 이 온도보다 낮거나 높으면 누출은 훨씬 적습니다. 계면활성제는 손상을 악화시킬 수 있습니다. Tm 구간을 더 빠르게 냉각·가온하면 막 손상과 누출이 줄어듭니다 [CRYOBIOLOGY; Hayes, LM; 42(2):88–102 (2001)]. 포화지방 비율이 높은 막일수록 상전이 온도 Tm가 높습니다. 일부 생물은 온도가 내려갈 때 막 지질의 불포화도를 높여 Tm를 낮추고 그 온도에서 일어나는 막 손상을 피할 수 있습니다.
탈수와 탈수 손상은 모든 냉동보호 방식에 관련됩니다. 물이 동결보호제로 대체되는 유리화에서는 적어도 일시적인 탈수가 일어납니다. 물이 보호제가 들어오는 속도보다 빨리 세포 밖으로 나가면서 ‘수축–팽창 주기’가 나타나기 때문입니다. 포스파티딜콜린의 극성 머리 하나는 보통 물 분자 약 열 개와 수소 결합합니다. 머리 부분의 수화 상태는 Tm에 큰 영향을 미칩니다. 물이 제거되면 머리 부분이 더 촘촘히 모여 Tm가 상당히 높아집니다.
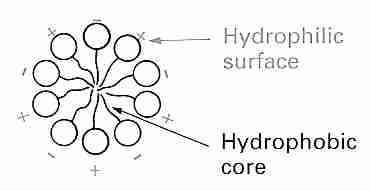
리포솜은 인지질로 이루어진 구체로, 막의 특성을 이해하는 실험 모델입니다. 수화된 포스파티딜콜린 리포솜의 Tm는 약 −10°C이지만 탈수시키면 약 60°C로 올라갑니다. 트레할로스 같은 당류를 넣으면 머리 부분 사이에 수소 결합을 형성해 소수성 꼬리가 더 자유롭게 움직일 수 있으므로, 탈수된 리포솜과 인지질 이중층의 Tm가 크게 낮아집니다 [BIOPHYSICAL JOURNAL; Koster, KL; 78(4):1932–1946 (2000)]. 당류가 Tm를 낮추면 탈수로 높아진 Tm가 주변 온도를 지나면서 막을 손상시키는 일을 피할 수 있습니다. 트레할로스는 동결건조 중 막 손상을 막을 만큼 Tm를 낮출 수 있습니다.
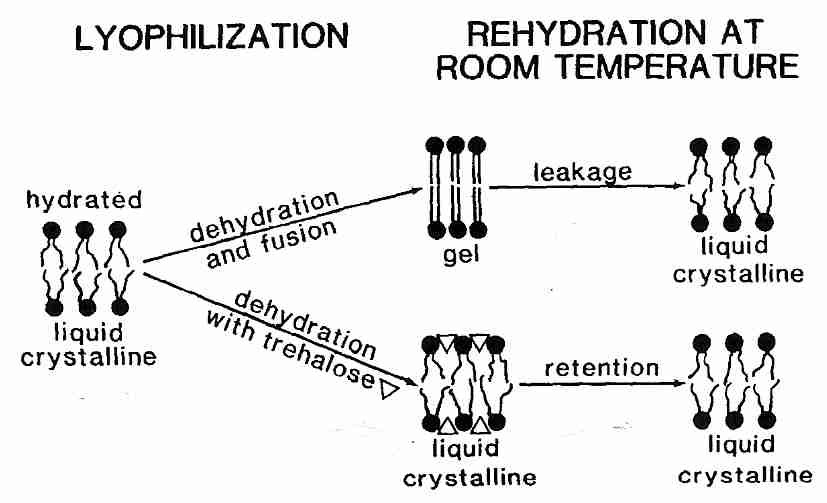
그렇지만 Tm를 낮추는 것만으로는 리포솜과 인지질 이중층의 탈수 손상을 막기에 충분하지 않습니다. 당류의 유무와 상관없이 리포솜이 탈수되면 서로 바짝 달라붙어 융합합니다. 융합이란 작은 리포솜 여러 개가 합쳐져 큰 리포솜 몇 개가 되는 것입니다. 세포막의 융합은 조직에 분명히 해롭고 세포 내용물의 상당한 누출을 일으킵니다. 그러나 유리화로 융합을 막을 수 있습니다.
순수한 자당은 186°C 이상에서 녹아 캐러멜로 분해되지만, 당분이 많은 액체 상태에서는 과냉각되어 65°C에서 비결정질 유리 상태로 굳을 수 있습니다. 이 상전이 온도를 유리전이 온도 Tg라고 합니다. 물과 자당의 혼합물도 Tg 위에서는 시럽 같은 액체이고 아래에서는 유리 같은 고체가 될 수 있습니다. 물이 늘어나면 자당–물 혼합물의 Tm는 물이 10%만 되어도 0°C보다 훨씬 낮아집니다 [BIOPHYSICAL JOURNAL; Sun, WQ; 70(4):1769–1776 (1996)]. 당 용액에서 리포솜이 탈수되면 Tg가 높아집니다. 탈수와 함께 Tg가 상승하여 주변 온도를 통과할 때 일어나는 탈유리화는 Tm가 주변 온도 위로 올라가는 것보다 더 심각한 손상을 일으킵니다. 가장 좋은 전략은 Tm를 주변 온도보다 충분히 낮게, Tg를 충분히 높게 유지하는 것입니다. 순수한 트레할로스의 Tg는 120°C로 자당의 75°C [THE JOURNAL OF PHYSICAL CHEMISTRY B; Lerbret, A; 109(21):11046–11057 (2005)]나 포도당의 30°C보다 훨씬 높습니다. 따라서 트레할로스가 탈수 시 Tm를 낮추는 능력에서 자당보다 낫지는 않더라도, 높은 Tg와 가수분해에 대한 저항성 때문에 탈수 보존에 선호됩니다.
유리화된 당류는 유리화되지 않은 당류와 다른 방식으로 막 지질과 상호작용합니다. 유리화된 당류에서는 당과 인지질 사이의 수소 결합 같은 특정 상호작용이 덜 중요합니다. 따라서 유리화된 당류 속의 막은 사용한 당이 트레할로스인지, 자당인지, 포도당인지, 솔비톨인지에 관계없이 비슷하게 행동합니다. POPC(1-팔미토일-2-올레오일포스파티딜콜린)에 대한 실험에서는 당류 없이 탈수시켰을 때 Tm가 −3°C에서 61°C로 높아졌습니다. 그러나 시험한 당류의 어떤 조합이든 첨가하면 탈수의 정도와 무관하게 Tm가 6°C를 넘지 않았습니다. 유리화된 당류가 있을 때의 Tm는 약 −25°C까지 낮아졌습니다 [BIOCHIMICA ET BIOPHYSICA ACTA; Koster, KL; 1193(1):143–150 (1994)].
트레할로스의 추가 설명은 당류를 이용한 냉동보존을 참조하십시오.
IX. 저온 손상과 냉충격
저온 손상과 냉충격은 얼음을 형성할 정도까지는 내려가지 않은 낮은 온도에서도 생존성을 떨어뜨립니다. 일반적으로 저온 손상은 세포가 정상적으로 기능하는 온도보다 낮은 임계 온도에 머무르면서 받는 손상을 말합니다. 냉충격은 온도가 급격히 또는 크게 떨어져 생존성이 감소하는 현상을 말합니다. 특히 세포막에서는 두 현상이 세포 소기관에 미치는 영향이 일부 겹칩니다. 기전이 명확하지 않아 용어의 사용에도 혼란이 있습니다. 물고기 배아의 냉동보존에서는 저온 손상과 냉충격이 유리화나 보호제 독성보다 더 큰 장애일 수 있습니다.
열충격은 단백질을 펼치거나 변성시키는 비교적 분명한 작용을 하며, 단백질 접힘을 유지하는 열충격 단백질인 샤페론의 생성을 유도합니다. 냉충격은 그보다 영향의 범위가 넓고 정의도 덜 분명합니다. 냉충격은 고초균 Bacillus subtilis에서 가장 많이 연구되었습니다. 냉충격은 가장 먼저 막 지질, 단백질의 형태, 핵산의 형태에 영향을 줍니다. mRNA의 번역이 억제되고 냉충격 단백질 생성이 유도됩니다. 막의 유동성을 높이기 위해 불포화지방산 합성도 증가합니다 [PHILOSOPHICAL TRANSACTIONS OF THE ROYAL SOCIETY B; Weber, MWH; 357:895–907 (2002)]. 포유류 세포에서는 초기 mRNA 번역이 냉충격 반응의 핵심 조절 지점으로 보입니다. 막에 결합한 효소의 활성과 확산 속도는 낮아집니다. 세균의 것과 매우 다른 포유류의 냉충격 단백질은 번역을 위해 mRNA와 리보솜을 세포골격으로 모을 수 있습니다 [THE BIOCHEMICAL JOURNAL; Al-Fageeh, MB; 397(Pt 2):247–259 (2006)].
저온 손상은 임계 온도에 노출된 시간이 길수록 커집니다. 따라서 임계 온도 구간을 빠르게 통과하는 냉각은 손상을 줄이는 방법이 될 수 있습니다 [CRYOBIOLOGY; Mazur, P; 29(1):39–68 (1992)]. 피터 메이저는 이미 근육과 신경을 포함한 조직 및 기관으로 분화한 약 5만 개 세포의 초파리 배아를 에틸렌글리콜로 유리화하는 획기적인 연구에서, 배아가 저온 손상에 극도로 민감하고 −25°C로 내려갈수록 더 민감해진다는 사실을 발견했습니다. 성공의 핵심은 분당 적어도 20,000°C로 냉각하여 저온 손상보다 앞서는 것이었습니다 [SCIENCE; Mazur, P; 258:1932–1935 (1992)]. 저온 민감성과 냉충격 모두에 취약한 물고기 배아에는 이처럼 빠른 냉각을 적용할 수 없습니다 [THERIOGENOLOGY; Liu, X; 55(3):1719–1731 (2001)].
동물 세포 저온 손상의 한 기전은 세포막의 상전이일 가능성이 있습니다 [CRYOBIOLOGY 42(2):88–102 (2001)]. 세포막 지질은 저온 손상이 가장 심한 0~20°C에서 액체상에서 겔상으로 전이할 것으로 예상됩니다. 식물 [NATURE 356:710–713 (1992)]과 양의 난모세포 [MOLECULAR REPRODUCTION AND DEVELOPMENT; Zeron, Y; 61(2):271–278 (2002)]에서는 저온 민감성을 낮춘 사례가 있습니다.
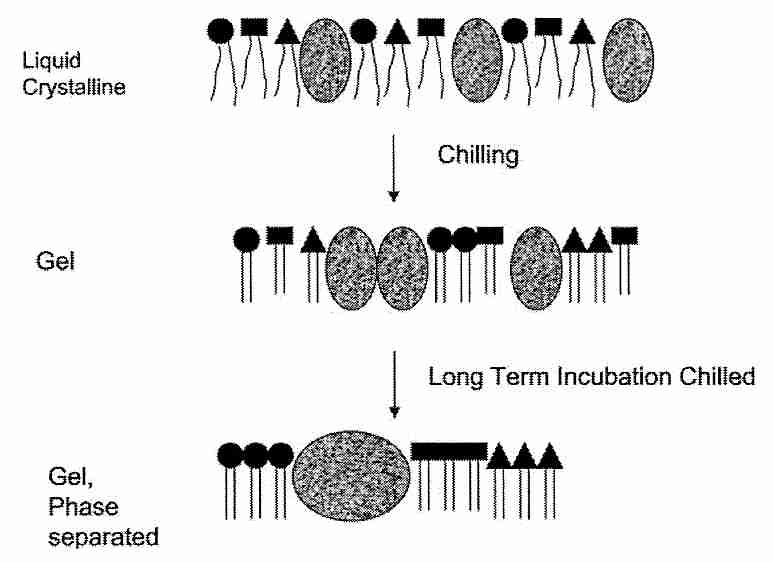
그러나 저온 손상에 따른 막 손상의 대부분이 단일 Tm, 즉 앞 절에서 설명한 열방성 상전이 온도에서 생기는 누출 때문이라고 보지는 않습니다. 주된 원인은 막 안에서 단백질과 인지질이 옆 방향으로 갈라져 모이는 현상으로 여겨집니다. 세포막 인지질은 머리 부분의 염기와 꼬리 부분의 지방산이 다양하여 균일하지 않습니다. 더욱 중요한 것은 막에 스핑고지질·콜레스테롤·특수 단백질이 많이 모여 있는, 세제에도 녹지 않는 ‘뗏목’이 존재한다는 점입니다 [NATURE; Simons, K; 387:569–572 (1997)]. 스핑고지질의 가장 단순한 형태인 세라마이드는 포화도가 높은 지방산 사슬을 가진 스핑고이드 염기로 이루어집니다. 세라마이드는 효소에 의해 세포 안으로 방출되어 신호 전달 분자로 작용할 수 있습니다. 세라마이드의 Tm는 인지질보다 훨씬 높으므로 냉각 중 세포막 곳곳의 기능이 균일하지 않게 저하되는 데 영향을 줍니다. 냉각 중 지질과 단백질 구성요소가 막에서 옆 방향으로 분리·응집하면 막의 조직이 크게 무너집니다.
혈소판은 저온 손상에 특히 취약하여 저온으로 인한 기능 장애의 연구 모델로 쓰여 왔습니다 [BIOCHIMICA ET BIOPHYSICA ACTA; Gosset, K; 1660(1–2):7–15 (2004)]. 트레할로스가 탈수 손상을 줄이듯, 인지질 머리 부분과 단백질에 수소 결합하여 응집에 따른 막의 저온 손상도 막을 수 있습니다 [CHEMISTRY AND PHYSICS OF LIPIDS; Crowe, JH; 122(1–2):41–52 (2003)]. 그래서 냉동보존에서는 상전이 구간에 머무는 시간을 줄이도록 빠르게 냉각하기도 합니다. 물고기와 돼지 배아에서는 지질, 즉 난황을 제거하여 저온 손상을 줄였습니다 [CRYOBIOLOGY 39(3):236–242 (1999)]. 트레할로스는 막의 ‘미세영역’들을 함께 묶어 이동을 제한함으로써 막 구성요소의 응집을 줄이는 것으로 보입니다. 세포막 인지질 이중층에서 트레할로스는 카보닐기에 결합한 물 분자를 밀어낼 수 있습니다 [BIOPHYSICAL JOURNAL; Amalfa, F; 78(5):2452–2458 (2000)]. 포유류 세포에 트레할로스를 넣는 방법으로는 세포에 구멍을 만들거나 [NATURE BIOTECHNOLOGY; Eroglu, A; 18(2):163–167 (2000)], 곤충의 트레할로스 수송 유전자를 복제하거나 [PROCEEDINGS OF THE NATIONAL ACADEMY OF SCIENCES (USA); Kikawada, T; 104(28):11585–11590 (2007)], 세포가 직접 트레할로스를 합성하도록 유전자를 도입하는 방법이 있습니다 [NATURE BIOTECHNOLOGY; Guo, N; 18(2):168–171 (2000)]. 이런 방법으로 동결 및 탈수 손상을 막았습니다.
같은 맥락에서 DMSO로 막의 투과성을 높여 트레할로스가 세포 안으로 들어가도록 하여 막의 내부 표면을 보호하기도 했습니다 [DIABETES 46:519–523 (1997)]. 재가온 시 DMSO의 독성은 크라이오닉스에서는 그리 큰 문제가 아닐 수 있습니다. 실제로 저온 손상으로 인한 막 손상은 전체 구조보다 생존성에 더 큰 영향을 미칠 수 있으므로 크라이오닉스에서는 상대적으로 덜 우려할 수도 있습니다.
극지방 물고기의 부동 당단백질은 막의 응집을 억제해 혈소판의 저온 손상을 줄입니다. 하지만 단백질을 제거하기 어려워 임상적으로는 사용할 수 없습니다 [CRYOBIOLOGY 43(2):114–123 (2001)]. 재가온 후 생존성보다 구조 보존에 더 관심이 있는 크라이오닉스 연구자에게는 이 문제가 덜 중요합니다. 메탄올은 제브라피시 배아를 저온 손상에서 보호하며, 지질막의 상전이 온도를 낮추기 때문일 수 있다는 추정이 있습니다 [THERIOGENOLOGY; Zhang, T; 59(7):1545–1556 (2003)].
저온 손상 또는 냉충격의 또 다른 원인은 단백질 변성입니다. 단백질이 열에 의해 변성되듯 냉각에 의해서도 변성될 수 있습니다. 온도가 낮아지면 단백질의 소수성 부분이 드러나는 데 따르는 에너지상 불이익이 줄어 단백질이 펼쳐집니다. 변성되는 단백질 가운데에는 항산화 효소, 특히 초과산화물불균등화효소(SOD)의 여러 형태도 있습니다. 이것이 공기가 없을 때 동결건조 후 생존성이 더 높은 이유를 설명할 수 있습니다. 빠른 냉각은 단백질 변성을 줄이는 효과적인 방법일 수 있습니다. 열충격 단백질과 트레할로스도 단백질을 보호하고 펼쳐짐을 줄입니다. 손상이 주로 효소 변성 때문이고 구조 손상은 작다면, 생존성에 미치는 영향은 크라이오닉스에서 상대적으로 덜 중요할 수 있습니다.
식물에서는 지방산의 불포화도를 높여 저온 민감성을 줄일 수 있었지만 [NATURE 356:710–713 (1992)], 식물의 저온 손상 또는 냉충격 상당 부분은 자유라디칼 손상에 기인하는 것으로 여겨집니다 [JOURNAL OF AGRICULTURAL AND FOOD CHEMISTRY 47:2410–2414 (1999)]. 냉각 중 자유라디칼 손상의 증거는 집파리 [CRYOBIOLOGY 33(4):447–458 (1996)]와, 다중불포화지방산이 많은 막을 가진 정자에서도 관찰되었습니다 [MOLECULAR REPRODUCTION AND DEVELOPMENT; Neild, DM; 72(2):230–238 (2005)].
냉각 또는 냉충격으로 미토콘드리아 효소의 전자전달계와 ATP 합성이 분리되는 현상도 확인되었습니다. 산화 스트레스가 높아지는 동시에 저온 때문에 항산화 효소 활성은 감소합니다. 항산화 효소인 카탈레이스의 활성은 온도가 내려갈수록 뚜렷하게 낮아지지만 퍼옥시데이스 활성은 변하지 않아 과산화수소가 쌓입니다. 저온에 강한 식물은 온도가 내려가면 카탈레이스 생산을 늘립니다. 칼슘 유입이 늘면 포스포리페이스가 활성화되어 지방산을 방출하고 막을 분해할 수 있습니다. 공기, 즉 산소를 차단하면 식물과 곤충의 저온 손상이 줄어드는 것으로 나타났습니다. 자유라디칼이 장시간 작용하면 구조를 파괴할 수 있습니다. 식물에서 보이는 것과 비슷한 기전 및 저온 허혈 때문에 포유류 조직에서도 어느 정도 자유라디칼에 의한 저온 손상이 일어날 가능성이 있습니다. 산소는 낮은 온도에서 물에 더 잘 녹아 활성산소에 의한 저온 손상을 키웁니다. 트레할로스는 자당과 달리 산화 손상으로부터 세포와 단백질을 보호합니다 [JOURNAL OF BIOLOGICAL CHEMISTRY; Benaroudj, N; 276(26):24261–24267 (2001)].
난모세포의 미세소관 중합은 온도에 매우 민감하여 0°C 바로 위에서도 미세소관이 완전히 해중합할 수 있습니다 [BIOLOGY OF REPRODUCTION; Aman, RR; 50(1):103–110 (1994)]. 어떤 경우에는 재가온 후 감수분열 방추사가 다시 중합하지만 [FERTILITY AND STERILITY; Ciotti, PM; 91(6):2399–2407 (2009)], 다른 경우에는 불규칙한 염색체 배열과 비정상적인 튜불린 구조가 재가온 후에도 남습니다 [FERTILITY AND STERILITY; Songsasen, N; 77(4):818–825 (2002)].
유리화 용액에 넣은 토끼 신장 피질 절편의 냉각 실험에서 생존성, 즉 K+/Na+ 비율을 저온 손상 또는 냉충격의 지표로 사용했습니다. 손상은 0°C에서 −85°C까지 선형적으로 증가했습니다. 이 손상이 지질의 상전이 때문일 가능성은 낮아 보입니다. 등장성의 1.2~1.5배인 고장성 용액에서는 0°C에서 −22°C까지의 저온 손상이 완전히 사라졌습니다. 등장성의 1.2배인 용액에서 −22°C까지 냉각하고 1.5배인 용액에서 −135°C까지 더 냉각하면 손상이 최소화되어 생존성이 85~90%였습니다 [CRYOBIOLOGY; Fahy, GM; 48(2):157–178 (2004)]. 세포를 어느 정도 수축시키면 저온 손상으로부터 보호되는 것으로 보입니다.
X. 크라이오닉스 연구의 평가 기준
크라이오닉스 연구에서는 유리화 조성의 효과를 평가하기 위해 세포 내 K+/Na+ 비율을 사용해 왔습니다. 동결보호제 투여 또는 냉각 후 다시 데웠을 때 이 비율이 정상이면 얼음 형성으로 세포막이 뚫리지 않았다는 징후입니다. 손상된 세포막에서는 세포 내 비율이 세포외액의 비율과 같아집니다. 이 비율은 생존성의 지표이기도 합니다. 보호제에 중독되어 죽은 세포는 ATP를 생산하거나 나트륨 펌프를 작동시킬 수 없기 때문입니다.
조직 시료를 보호제와 저온에 노출하면 나트륨 펌프가 기능하지 못하고 이온이 새어 나가 세포 내 K+/Na+ 비율이 세포외 수준에 가까워집니다. 유리화가 효과적이었다면 조직을 다시 데우고 보호제를 씻어낸 뒤 나트륨 펌프가 정상적인 비율을 회복합니다. 이를 위해 조직 절편을 따뜻하고 산소가 공급되는 배지에 배양합니다. 40~60분이면 조직 절편은 정의상 생존성에 비례하는 K+/Na+ 비율을 보입니다. 정상 세포 내 비율의 85%를 회복했다면 생존성이 85%라고 말합니다. 이 지표는 나트륨 펌프의 기능과 미토콘드리아의 ATP 생성 능력을 함께 측정하지만 어느 쪽이 영향을 받았는지는 구별하지 못합니다. 우아바인으로 나트륨 펌프를 억제하면 약 30분 안에 조직의 세포 내 K+/Na+ 비율이 주변 환경의 비율과 같아집니다.
K+/Na+ 검사의 가장 큰 장점은 비용이 낮고 현미경 사진에 나타나는 구조 손상보다 측정하기 쉽다는 것입니다. 결과를 정량화할 수 있으며 빠르게 얻을 수 있습니다. 전자현미경 사진(EM)을 찍는 것보다 분명 비용이 적지만, 얼음에 의한 구조 손상이 없는지를 확인하는 궁극적인 기준은 전자현미경 사진입니다. K+/Na+ 비율과 전자현미경 사진, 즉 생존성과 구조 완전성의 두 지표는 모두 재가온을 필요로 하므로 탈유리화가 일어날 수 있습니다. 경제적으로 가능하다면 재가온 없이 −130°C에서 조직 구조를 평가하는 저온 조직학이 장기 보관 중 구조 보존 상태를 평가하는 가장 좋은 방법일 것입니다. 그럼에도 시료를 재가온해 만든 조직 표본에 얼음 손상이 없다면 구조 손상이 없다는 점을 확인할 수 있습니다.
유리화, 즉 얼음 형성과 그에 따른 구조 손상이 없음을 평가하는 또 다른 도구는 시차주사열량계(DSC)입니다. 1~10mg의 작은 조직 시료에서 얼음 형성과 유리전이의 ‘열 신호’를 감지할 수 있습니다. 저온생물학자 피에르 부통은 얼음 형성 0.5%를 구조 손상의 하한선으로 삼았지만, 21세기 의학(21CM)은 더 엄격하게 0.2%를 사용합니다. 사실 두 수치 모두 확정적인 근거가 없습니다. 다만 얼음이 전혀 형성되지 않으면 얼음으로 인한 손상도 전혀 없을 것입니다. 전자현미경 검사를 위해 작은 시료를 꺼내 재가온하듯 DSC 분석에도 작은 시료를 꺼내 재가온할 수 있습니다. DSC는 정량적이라는 장점이 있지만, 얼음 형성이 0보다 큰 한 구조 손상의 부재를 확인하는 데에는 여전히 전자현미경보다 덜 결정적인 지표입니다.
손상이나 생존성 상실이 확인되더라도 원인을 밝히는 데에는 도움이 되지 않을 때가 많습니다. 손상은 보호제 주입, 냉각, 재가온 또는 보호제 제거 중 어느 단계에서든 생길 수 있습니다. 저온 손상, 삼투압 손상, 보호제 독성, 탈유리화가 모두 생존성을 낮춥니다. 신경세포는 생존성을 잃었지만 신경교세포는 그렇지 않아 신경세포의 손실이 가려질 수도 있습니다. 전자현미경 사진은 서로 다른 세포 유형의 손상을 식별하는 데 유용합니다. 해결책을 찾으려면 손상의 원인을 아는 것이 매우 중요하지만 K+/Na+ 검사와 전자현미경 사진 모두 그 점에서는 도움이 되지 않을 때가 많습니다. 반면 DSC는 Tm 값과 관련 저온 손상을 찾아내는 데 유용할 수 있습니다 [CRYOBIOLOGY; Hayes, LM; 42(2):88–102 (2001)].
제 생각에 크라이오닉스 연구에서는 보호제의 효과와 절차를 평가하는 첫 검사로 K+/Na+ 검사를 사용해야 합니다. 생존성이 낮더라도 정상의 40% 수준인 K+/Na+ 비율은 세포막이 온전하고 구조 손상이 없다는 것을 나타냅니다. 그다음에는 가능한 경우 DSC, 광학현미경 사진(LM), 마지막으로 전자현미경 사진에 중점을 두어야 합니다. 완벽한 전자현미경 사진을 얻고서야 구조 손상이 없어졌다고 확신할 수 있습니다. 그때가 되면 K+/Na+ 비율을 정상의 100%, 즉 완전한 생존성에 가깝게 높이는 데 다시 집중할 여유가 생길 것입니다.
XI. 부록: qv* 계산 예시
RPS-2의 1,3-프로판다이올
Cryobiology 21:407 (1984)의 표 1에는 1,3-프로판다이올의 유리화에 필요한 농도가 57%(w/v)로 제시되어 있습니다. 따라서 운반 용액 RPS-2(신장 관류 용액 2)에 1,3-프로판다이올 57g이 들어 있다고 가정하겠습니다. *는 곱하기, /는 나누기를 뜻합니다.
1,3-프로판다이올의 밀도는 1.0597g/mL이므로 용액 100mL에 들어 있는 1,3-프로판다이올의 부피는 다음과 같습니다.
57 * (1/1.0597) = 53.79mL
여기에 RPS-2 성분 2.00mL를 더하면 55.79mL입니다 [Cryobiology 48:22 (2004), 표 2].
따라서 물의 부피는 다음과 같습니다.
100mL − 55.79mL = 44.21mL
물의 밀도는 1g/mL이고 몰질량은 18.015g/mol입니다. 따라서 물 44.21g은 다음과 같습니다.
44.21g * (1/18.015g/mol) = 물 2.454mol
1,3-프로판다이올의 몰질량은 76.09이므로 다음과 같습니다.
57g * (1/76.09) = 1,3-프로판다이올 0.7491mol
1,3-프로판다이올 한 분자에는 극성 기가 두 개 있습니다. 그러므로 용액 100mL당 값은 다음과 같습니다.
qv* = MW / MPG = 2.454 / (2 * 0.7491) = 1.64
이는 미국 특허 6,395,467호의 표 1에 제시된 1.6과 가깝습니다.
RPS-2의 EG, PG 및 PVP
이것은 Cryobiology 48:22 (2004)의 표 1에 나오는 용액 14의 qv* 계산입니다. 용액 14는 RPS-2(신장 관류 용액 2) 운반 용액에 에틸렌글리콜(EG)과 프로필렌글리콜(PG)을 같은 양씩 넣고 폴리비닐피롤리돈(PVP)을 6%로 넣은 것입니다.
이 계산에서는 소수 자릿수를 계산 내내 유지하고 마지막에 반올림합니다. *는 곱하기, /는 나누기를 뜻합니다.
표 1에 표시된 용액 14의 유리화에 필요한 농도는 46%(w/v)입니다. 용액 14의 100mL에는 EG 20g, PG 20g, PVP 6g과 RPS-2가 들어 있습니다.
EG의 밀도는 1.1132g/mL이므로 부피는 다음과 같습니다.
20mL * (1/1.1132g/mL) = 17.9662mL
PG의 밀도는 1.036g/mL이므로 부피는 다음과 같습니다.
20mL * (1/1.1036g/mL) = 19.305mL
표 2에 따르면 PVP의 밀도는 1.28g/mL, 즉 0.782mL/g이므로 부피는 다음과 같습니다.
6mL * 0.782mL/g = 4.692mL
표 2에 나온 RPS-2 고체 성분의 부피는 2.00mL입니다. 따라서 EG + PG + PVP + RPS-2의 총부피는 다음과 같습니다.
17.9662mL + 19.305mL + 4.696mL + 2.00mL = 43.9672mL
따라서 물의 부피는 다음과 같습니다.
100mL − 43.9672mL = 56.0328mL
여기에는 EG 17.9662mL, PG 19.305mL, PVP 4.696mL와 RPS-2를 더하면 총 100mL의 용액이 된다는 단순화된 가정이 들어 있습니다. 실제로는 꼭 그렇지 않지만 대략적인 값으로는 맞습니다.
물의 밀도는 1g/mL이고 몰질량은 18.015g/mol입니다. 따라서 물 56.0328g은 다음과 같습니다.
56.0328g * (1/18.015g/mol) = 물 3.11034mol
EG, PG 및 PVP의 몰질량은 각각 62.068, 79.06, 40,000이므로 다음과 같습니다.
20g * (1/62.068g/mol) = EG 0.332956mol
20g * (1/79.06g/mol) = PG 0.252972mol
6g * (1/40,000g/mol) = PVP 0.00015mol
EG와 PG 한 분자에는 각각 극성 기가 두 개 있지만 PVP 한 분자에 극성 기가 몇 개인지는 알 수 없습니다. PVP에 극성 기가 하나뿐이라면, 가능성은 매우 낮지만 그 영향은 무시할 정도일 것입니다. PVP의 극성 기 수에 대한 값이 없으므로 이를 제외하고, 극성 기의 몰수는 EG와 PG의 극성 기에서 계산하겠습니다. PVP는 세포막을 통과하기에는 분자가 너무 크므로 침투성 보호제만 관련이 있다고 가정합니다.
(EG 0.332956mol + PG 0.252972mol) * 2 = 극성 기 1.17186mol
따라서 용액 1dL당 값은 다음과 같습니다.
qv* = 물의 몰수 / 극성 기의 몰수 = MW / MPG
= 3.11034 / 1.17186 = 2.6542
이는 Cryobiology 48:22 (2004)의 표 1에 제시된 2.67과 가깝습니다.
